Visualizzazione post con etichetta Sistematica. Mostra tutti i post

giovedì 25 dicembre 2008

Diversi sistemi di classificazione delle angiosperme

Diversi sistemi di classificazione delle angiosperme

Un primo tentativo di costruire una classificazione naturale viene effettuato dalla scuola germanica di Engler e Wettstein. Per Engler e, successivamente, Wettstein l’idea portante è che le forme semplici siano da interpretare come primitive e le forme complesse come evolute. Essi ritengono, inoltre, più primitive le piante con fiori grandi isolati e più evolute quelle con fiori piccoli riuniti in infiorescenze che simulano grandi fiori. Considerano tra i caratteri importanti la posizione dell’ovario (che da supero, diviene infero), il concrescimento dei carpelli, etc.

Dal punto di vista filogenetico Engler e Wettstein non tengono conto della possibile riduzione e atrofia di parti fiorali nel corso dell’evoluzione.

Sistema di classificazione di Engler (1897)

Angiosperme

Dicotiledoni

Archiclamidee

Monoclamidee

Dialipetale

Metaclamidee

Monocotiledoni

Fino ad oltre il 1950 il sistema seguito è quello della scuola germanica. Alla fine dell’800 nasce anche la scuola anglosassone, cominciata da Bessey. Egli costruisce una prima classificazione filogenetica che tiene conto delle riduzioni e delle atrofie che possono semplificare secondariamente caratteri complessi.

Per esempio: per la scuola germanica le “amentifere” (piante con amenti) sono considerate le più primitive poiché anemofile, mentre per la scuola anglosassone le Magnoliaceae sono le più primitiva a causa del loro fiore. Secondo la scuola anglosassone le “amentifere” hanno sviluppato secondariamente l’anemofilia e l’unisessualità.

È proprio dalla logica seguita dalla scuola anglosassone che derivano le classificazioni moderne.

Le classificazioni moderne si basano sempre su una vasta gamma di caratteri, tra i quali vengono presi in considerazione, oltre a quelli morfologico-anatomici, sempre più caratteri individuati con le analisi sierologiche, la determinazione delle sequenze degli amminoacidi per le proteine o dei nucleotidi degli acidi nucleici, lo studio della biosintesi di metabolici secondari e le osservazioni ultrastrutturali.

Takhtajan (1967-1969) mette in evidenza alcuni fatti che emergono dai dati disponibili:

  • La probabile origine monofiletica delle angiosperme.

  • Anche se non si conoscono fossili sicuri prima del Cretaceo, probabilmente, sono da interpretarsi come angiosperme dei fossili del Giurassico e forse della fine del Triassico.

  • Il luogo di origine delle angiosperme va ricercato dove esistono numerose famiglie e generi con caratteri di primitività, cioè in Asia sudorientale, tra l’Assam e le isole Fiji (parti dell’originale Gondwana).

Cronquist (1968) delinea uno schema fondamentale simile a quello di Takhtajan, col quale è stato in parte integrato. Lo schema tassonomico seguito dalla maggior parte dei testi didattici è quello di Takhtajan e Cronquist, eventualmente con qualche modifica.

Takhtajan e Cronquist costruiscono una classificazione filogenetica molto utilizzata poiché ancora caratterizzata da una certa praticità.


Un nuovo schema di classificazione, che tiene conto in particolare dell’analisi cladistica dei dati morfologici e biomolecolari, è stato proposto da un gruppo di ricercatori, l’APG (Angiosperm Phylogeny Group) nel 1998. Naturalmente anch’esso potrà essere modificato in seguito all’apporto di nuovi dati.

str

La tendenza attuale è nel distinguere due principali tipi di classificazione a seconda dell’uso a cui sono destinate: classificazioni pratiche (utilizzate nelle flore) e classificazioni moderne filogenetiche (utilizzate nell’analisi filogenetica).

Tappe evolutive dell'origine delle Magnoliophyina

Tappe evolutive dell'origine delle Magnoliophyina

Pteridofite primitive: felci isosporee con gametofiti liberi.
Pteridofite derivate: felci eterosporee con gametofiti germinanti dentro le spore.
Conservazione della spora nello sporangio e sporocarpi protettivi
Pteridosperme: Formazione dell'ovulo con gametofito femminile racchiuso nel macrosporangio, che diviene la nucella di nutrimento, gametofiti maschili liberi (polline) dotati di tubetto pollinico e spermatozoidi flagellati.
Angiosperme: chiusura degli ovuli nell'ovario e stimma per catturare il polline, micropilo nascosto e raggiunto solo dai nuclei spermatici. Vi è una tendenza nel prolungare il percorso del tubetto pollinico per permettere una rigida selezione dei nuclei spermatici ed evitare l'autogamia.

mercoledì 24 dicembre 2008

dispersione idrocora

  • Dispersione idrocora: il frutto possiede delle strutture per il galleggiamento, grazie alle quali colonizza diverse aree. Ne è un esempio il cocco, che galleggia sull’acqua rimanendo però protetto al suo interno da un involucro lignificato.

dispersione autocora

  • Dispersione autocora: la pianta stessa spara i semi lontano. Per esempio i legumi che si aprono bruscamente scagliando i semi (in Ecballium elaterium, il cocomero asinino, il frutto scoppia).

Dispersione anemocora

  • Dispersione anemocora: questo tipo di dispersione viene attuata tramite pappi o ali che permettono al seme di essere portato lontano dalla pianta madre.

dispersione zoocora

  • Dispersione zoocora: questo tipo di dispersione avviene tramite animali, o l’uomo (dispersione antropocora). Le specie che sfruttano questo tipo di dispersione hanno spesso frutti carnosi che vengono ingeriti dagli animali, mentre i semi sono espulsi intatti. Se invece possiedono frutti secchi, questi hanno appendici con cui si impigliano nel pelo o nelle piume. Un tipo particolare di dispersione zoocora è quella mirmecocora, dove i semi vengono trasportati dalle formiche. I semi possiedono escrescenze carnose (strofiolo e caruncola) che vengono mangiate dalle formiche, senza che si cibino anche del seme, che viene disperso.

martedì 23 dicembre 2008

semi ed embrione

Semi ed embrione

Dopo la fecondazione dell’oosfera si ha la formazione del seme a partire dai tegumenti degli ovuli. Nel seme, a maturazione, possiedono la testa e i tegumenti. I tegumenti del seme sono 2 o 1 a seconda dei tegumenti dell’ovulo da cui deriva. Vi sono poi altre strutture accessorie: lo strofiolo (un’escrescenza carnosa del funicolo dell’ovulo), la caruncola (un’escrescenza della zona micropilare), l’ilo (punto in cui si attacca il funicolo).
Il seme contiene anche i tessuti di riserva derivanti dalla seconda fecondazione dei nuclei polari, che formano l’endosperma secondario 3n. Questa sostanza di riserva può essere cellularizzata o meno, la nucella rimanente prende il nome di perisperma. In alcune dicotiledoni l’endosperma viene riassorbito ed il perisperma viene contenuto nei cotiledoni.
I semi si distinguono in base al tipo di nutrimento che contengono:
Semi albuminosi: possiedono l’endosperma secondario come sostanza di riserva.
Semi escalbuminosi: possiedono il perisperma nei cotiledoni come sostanza di riserva.
Vi sono poi alcuni casi particolari:
Semi di ricino: sono semi albuminosi con granuli di aleurone e gocce d’olio.
Semi di agrostena: l’embrione è avvolto all’endosperma.
Semi di lino: il tegumento ha funzione di riserva.
All’interno del seme è contenuto l’embrione 2n, derivante dalla fecondazione dell’oosfera, esso è costituito da:
1 cellula basale
Cellule del sospensore
1 cellula apicale
La cellula apicale si divide e differenzia in regioni che a loro volta si differenzieranno nella pianta adulta:
Radichetta, posta nella parte basale.
Asse ipocotile
Cotiledoni, al centro dell’embrione.
Asse epicotile
Plumula, all’apice dell’embrione.
Inizialmente l’embrione è ripiegato su se stesso nel seme, poi grazie alle divisioni cellulari l’asse epicotile si rivolge verso l’alto e l’embrione si dispiega.

lunedì 22 dicembre 2008

Noce


Noce

Capsula setticida, si apre presso i setti.


Capsula setticida, si apre presso i setti.

Siliqua e siliquetta, possiedono 2 valve con una lamina centrale (replum), un falso setto (Capsella, Cardamine).

  • Siliqua e siliquetta, possiedono 2 valve con una lamina centrale (replum), un falso setto (Capsella, Cardamine).

Legume, possiede 2 valve senza lamina centrale.

  • Legume, possiede 2 valve senza lamina centrale.

frutti

Frutti
Il frutto deriva da parti del fiore o da fiori interi o da infiorescenze. Racchiude i semi fino alla loro maturazione e ne favorisce la diffusione, infatti forma e funzione dipendono essenzialmente dalla modalità di diffusione. Generalmente si distinguono 3 tegumenti del frutto che derivano dalla parete dell’ovario:
- Pericarpo, unistratificato.
- Mesocarpo, pluristrtificato.
- Endocarpo, unistratificato.
Questi tre tegumenti assumono consistenza differente nelle differenti specie, generalmente distinguibili in frutti secchi e frutti carnosi.
Nei frutti secchi tutte le parti del frutto maturo sono secche (cellule morte).
Nei frutti carnosi pericarpo, endocarpo e soprattutto mesocarpo sono carnosi (cellule vive) a maturazione. La polpa è costituita dall’endocarpo che si sviluppa verso l’interno e tra i semi (agrumi e banane).
I frutti si possono essere:
- Frutti semplici: frutti singoli derivanti da un fiore.
- Frutti composti o infruttescenze: derivanti da un fiore.
- Frutti sinantocarpici: derivanti da infiorescenze.

I frutti si dividono anche sulla base dell’emissione dei semi:
- Frutti deiscenti: si aprono liberando i semi.
- Frutti indeiscenti.
- Frutti dirompenti.

Rischio di autogamia

Rischio di autogamia

L’autogamia è generalmente evitata dagli organismi ermafroditi per non abbassare la variabilità genetica della generazione successiva, in modo da garantirne il successo adattativi.
Per questo motivo, nel corso dell’evoluzione si sono sviluppate tecniche per impedire l’autogamia:
Proterandria: sviluppo precoce degli elementi sessuali maschili in un fiore ermafrodito.
Proteroginia: sviluppo precoce degli elementi sessuali femminili in un fiore ermafrodito.
Riconoscimento di parentela a livello stigmatico: lo stigma riconosce se il polline possiede lo stesso patrimonio genetico e gli impedisce di germinare, oppure germina ma il tubetto pollinico non penetra.
Barriere dopo la germinazione: il polline germina sullo stigma ma incontra barriere alla fecondazione.
Aborto: gli embrioni generati per autogamia vengono abortiti. Questo meccanismo è raro poiché richiede un alto dispendio energetico.
Talvolta l’autogamia è favorita. Questo accade quando l’ambiente impedisce l’impollinazione da parte di altri individui. Anche a questo scopo si sono evoluti meccanismi appositi:
Fiori autogami facoltativi: ricorrono all’autogamia solo se non avviene l’allogamia.
Fiori apomittici: si riproducono per apomissia, cioè quando un’oosfera si sviluppa in un embrione senza essere fecondata.
Fiori cleistogami: fiori che si autoimpollinano prima ancora di aprirsi.

domenica 21 dicembre 2008

Impollinazione

Impollinazione
Si pensa che l’impollinazione entomofila sia la più primitiva, mentre l’anemofilia sia secondaria e legata a particolari ambienti (al contrario delle gimnosperme). Anche oggi l’impollinazione entomofila è la più importante. Inizialmente gli insetti impollinatori (o pronubi) erano coleotteri che con il loro apparato masticatore aggredivano sia il polline che l’ovario. In questo modo le antiche angiosperme dovevano produrre una grande quantità di polline e proteggere l’ovario. Perciò si assiste ad un’evoluzione parallela di piante e insetti, fino ad avere rapporti specie specifici (infeudazione):
Coleotteri: impollinano fiori grandi e robusti.
Imenotteri: impollinano fiori con struttura dorsoventrale (di appoggio), corolla papilionacea o labiata.
Lepidotteri: impollinano fiori con corolle tubolari e petali speronati (in Madagascar, un’orchidea ha uno sperone di 32 cm!).
Per attirare gli insetti impollinatori si sono evoluti diversi accorgimenti per rendere i fiori più attraenti. Strutture secernenti il nettare, i nettari, con diverse derivazioni:
Nettari da stami.
Nettari dal ricettacolo.
Nettari dal perianzio.
Strutture colorate, secondo maculazioni o disegni che imitano le femmine corrispondenti dei maschi dell’insetto impollinatore. Strutture secernenti sostanze odorose, o profumate o con odori particolari (per esempio la Rafflesia arnoldi odora di carne putrescente per attirare ditteri). In casi particolari (orchidee) vengono secrete sostanze molto simili a ferormoni corrispondenti per le specie impollintrici.
In alcuni gruppi si sono evoluti meccanismi complessi e strutture specializzate per attirare gli insetti pronubi:
Fiori a trappola: sono piante dotate di spadice, una struttura sterile che accoglie l’infiorescenza in una fossetta. L’infiorescenza possiede fiori femminili alla base e maschili in alto, sovrastati da un ciuffo di peli. Gli insetti impollinatori sono ditteri che rimangono intrappolati dai peli. Quando arrivano i fiori maschili arrivano a maturazione, e rilasciano il polline sui ditteri. In seguito i peli si riaprono e liberano i ditteri che vanno a fecondare altri fiori.
Orchidee Ophris: il labello simula l’addome dell’insetto impollinatore ed emette feromoni. In alcune specie vi è uno specchietto in cui le gli insetti si riflettono!
Fico: sviluppa infiorescenze di due tipi, con ovari a stilo lungo e a stilo corto. Il suo insetto impollinatore è la Blastophaga: essa penetra nelle infiorescenze con stilo corto e deposita le uova. Ne nascono larve che si cibano degli ovari ma ne escono come insetti perfetti riempiti di polline. Questi, possono incontrare infiorescenze con ovari a stilo lungo, dove non riescono a deporre uova, limitandosi a impollinarle.
Salvia: il fiore possiede un antera sterile e una fertile. L’insetto impollinatore spinge l’antera sterile così che quella fertile tocca il suo addome, lasciando il polline.
In alcuni casi si assiste ad un tipo di impollinazione zoofila particolare:
Impollinazione ornitofila, presente soprattutto in piante tropicali. In Sud America vi sono i colibrì, in Africa le nettarine.
Impollinazione chirotterofila, cioè con pipistrelli. Sono fiori grossi e tubulosi con stigmi pennacchio.
Nelle angiosperme l’anemofilia è considerata sempre secondaria rispetto all’entomofilia. La tendenza al ritorno all’anemofilia può essere vantaggioso per specie che costituiscono formazioni monofitiche (per esempio nelle faggete) e zone con pochi insetti.


La transizione dall’entomofilia è visibile anche in differenti specie di uno stesso genere, per esempio: Sanguisorba officinalis con impollinazione entomofila e S. minor con impollinazione anemofila.
Una famiglia particolarmente adattata all’anemofilia sono le graminacee: nelle infiorescenze ciascun fiore possiede lunghi stami che vengono sbattuti dal vento in modo da disperderne il polline.

Un ultimo caso di impollinazione è l’idrofilia: nelle piante con impollinazione idrofila i fiori sono poco vistosi ed il polline è riunito in catenelle allungate, che vengono trasportate dall’acqua fino agli ovari.

androceo: coso dell'evoluzione

Nel corso dell’evoluzione si assiste ad una riduzione del numero di ovuli e ad un cambiamento della posizione degli ovuli nell’ovario (placentazione):
Placentazione assile.
Placentazione centrale.
Placentazione basale.
Inoltre l’ovulo può essere in diverse posizioni:
Atropo o ortotropo, cioè eretto, il tipo più primitivo.
Campilotropo, cioè orizzontale, il tipo intermedio.
Anatropo, cioè ripiegato, il tipo più comune ed evoluto.
Il gametofito femminile (sacco embrionale) non sviluppa mai archegoni. Si riduce a una struttura a 8 nuclei e 7 cellule. Degli 8 nuclei solo 3 si cellularizzano in posizione basale (cellule antipodali), altri 3 nuclei si cellularizzano nella parte apicale (cellule sinergidi) ai lati dell’oosfera. Gli ultimi 2 nuclei sono i nuclei polari liberi.
La doppia fecondazione avviene quando il tubetto pollinico penetra nelle cellule sinergidi: uno dei nuclei spermatici feconda l’oosfera, che originerà l’embrione 2n, mentre l’altro nucleo spematico si fonde con entrambi i nuclei polari formando una cellula 3n che originerà l’endosperma secondario (albume) importante nel nutrimento dell’embrione.
Durante l’evoluzione delle angiosperme si verificano modificazioni della sequenza fecondativa, ma la doppia fecondazione accomuna tutte le angiosperme e ne supporta la monofiletia.
Si ha la formazione di veri frutti, che derivano dalla trasformazione del pistillo e del ricettacolo. L’evoluzione del frutto è in stretta connessione con il tipo di dispersione adottato.

androceo : ovario

L’ovario, contenente l’ovulo con l’oosfera, durante l’evoluzione, si approfonda sempre di più nel ricettacolo (da un ovario supero a un ovario infero). Il numero di carpelli per ovario cambia durante l’evoluzione:
Ovari monocarpellari: con un solo carpello, tipico di specie più primitive.
Ovari policarpellari apocarpici: con più carpelli separati.
Ovari sincarpici più stili: con carpelli fusi.
Ovari sincarpici con uno stilo.
L’ovario sincarpico può avere un solo scomparto (uniloculare) o tre (triloculare).
L’ovulo contiene l’oosfera. L’ovulo possiede un solo tegumento o 2 ed è irrorato da un sistema conduttore (funicolo e calaza). Il funicolo e i tegumenti possono fondersi in una struttura chiamata rafe.
All’interno dell’ovulo vi è la nucella, spesso molto ridotta (ovulo tenuinucellato), ma talvolta è grossa e costituisce il perisperma (ovuli crassinucellati).

gineceo : generale


Gineceo

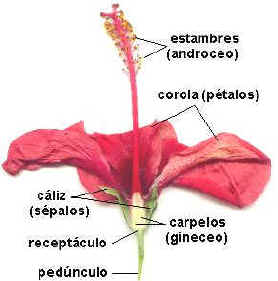
Il gineceo è costituito dall’insieme degli elementi sessuali femminili, i pistilli (megasporofilli). Nei progenitori delle angiosperme, il carpello è un megasporofillo richiuso e protetto da peli, ma non vi è ancora una completa fusione. Nelle angiosperme odierne, Il pistillo è costituito dall’ovario, dallo stilo e dallo stigma, posto al suo apice. Se lo stilo è assente, lo stigma è sessile.

I fiori più primitivi possono avere più pistilli posti a spirale, in seguito, nell’evoluzione, si dispongono su verticilli. Più pistilli (ginecei coricarpici o apocarpici) possono poi fondersi anche in un solo pistillo (ginecei cenocarpici o sincarpici).

Androceo


Androceo

L’androceo è composto dagli stami (microsporofilli). Essi sono costituiti da un filamento e dall’antera (dove è contenuto il polline). Nei gruppi più primitivi (Ranunculaceae) si hanno molti stami (poliandria) a disposizione spiralata, questi vengono a ridursi nei gruppi più evoluti fino ad un ciclo; anche se talvolta si può avere un aumento secondario del numero di stami (poliandria secondaria).
Gli stami delle specie più primitive sono laminari e le antere sono portate sulla lamina superiore (dorsifissi), durante l’evoluzione, subiscono riduzione progressiva (poliadi, tetradi, monadi).
Gli stami si definiscono:
Stami poliadelfi, se fusi insieme.
Stami diadelfi, se riuniti in due gruppi.
Stami monadelfi, se
L’antera è costituita da 4 secche polliniche, riunite 2 a 2, e spesso fuse in sinangi. Le antere assumono diverse posizioni (basifisse, dorsifisse, ventrifisse) e possono anche fondersi. I tessuti costituenti sono: epidermide, tessuto connettivo, tessuto meccanico (endotecio, che aiuta la fuoriuscita delle spore), tappeto plasmodiale (cellule che si disfano formando sostanze nutritive). Si definisce pollinio il contenuto dell’intera sacca pollinica; pollinario è invece il contenuto dell’intera antera.
I granuli pollinici sono microspore che germinano sullo stigma. Possiedono una parete con 1 o più pori germinativi (da cui escono i tubetti pollinici) e concamerazioni dove finiscono essudati che permettono la comunicazione con l’esterno. La parete ha una struttura complessa di scleroproteine: intina (interna) ed esina o sporopollenina (esterna) resistente all’attacco di acidi e basi forti. L’esina è dotata di un mastice pollinico, derivato dalle cellule del tappeto, che favorisce l’adesione del polline alle zampe degli insetti pronubi. Il peso dipende dal tipo di diffusione adottato.
I pollini sono anche importanti elementi diagnostici (oggetto della palinologia) e si classificano in base al numero di pori e all’ornamentazione:
Pori:
1 poro: monoporato o ulcerato.
3 pori: triporato.
Più di 3 pori: stefanoporato.
Tutto porato: pantoporato.
Solchi:
1 solco: monosolcato.
3 solchi: trisolcato.
Più di 3 solchi: stefanosolcato.
Tutto solcato: pantosolcato.
Vi può essere anche una combinazione di pori e solchi (polline colporato).
Il gametofito maschile si riduce a 2 o 3 cellule, mancano la cellula protallare e quella del peduncolo e non vi sono mai spermatozoidi. Si distinguono:
Pollini trinucleati: 2 nuclei spermatici e 1 cellula del tubetto pollinico.
Pollini binucleati: 1 nucleo spermatico e 1 cellula del tubetto pollinico.

Riproduzione grado angiosperme


Riproduzione

Il fiore possiede strutture sterili che costituiscono il perianzio (sepali e petali o tepali) e strutture fertili maschili, gli stami, e femminili, i carpelli, spesso riunite in fiori ermafroditi. Si ipotizza che il motivo della promozione dell’ermafroditismo sia stata la coevoluzione tra fiori e insetti fin dalla loro origine (entomofilia), mentre l’anemofilia, nelle angiosperme è sempre secondaria.

Le angiosperme sono le prime ad avere gli ovuli avvolti dalle foglie carpellari, evolutisi dai megasporofilli (che portavano gli ovuli). La struttura che ne deriva è detta pistillo ed è costituita dall'ovario, che contiene l'ovulo, posto sulla placenta, e dallo stilo, al cui apice è posto lo stigma sul quale germina il polline (impollinazione stigmatica). Il polline invia il tubetto pollinico attraverso il pistillo fino a raggiungere il micropilo e quindi l’oosfera.

Gli elementi sessuali nel fiore sono riuniti nell’androceo e nel gineceo.

sabato 20 dicembre 2008

tipi di infiorescenze speciali

tipi di infiorescenza
Infiorescenze speciali:
Spighetta (Graminaceae): possiedono brattee sterili (glume) e glumette con filamenti chiamati codicule. Gli stigmi sono piumosi e sporgenti, gli stami sono lunghi e le antere rimangono fuori dalla spiga.

Siconio
Ciazio: un unico ricettacolo con più fiori maschili e un fiore femminile composto da peduncolo e ovario.
Spadice